先讲明白
绿茶、红茶、乌龙茶等日常饮用的茶,通常都由茶树的芽叶加工而来。茶树是常绿木本植物,茶园里低矮整齐的茶蓬往往经过修剪,叶片大小、枝条与花果则呈现出不同的植物特征。
这篇从芽、叶、花果和叶片内部结构开始,连接大叶种与小叶种、生长环境和采摘季节,解释这些差异怎样成为制茶的原料基础。认识植物本身,才能分清“一芽二叶”“大叶种”和“红茶”各自在描述什么。
记住这三个要点
- 植物来源与成茶类别要分开同一茶树品种可以采用不同制法,六大茶类主要由加工中的关键变化区分。
- 芽叶形态说明原料单芽、带叶新梢与较成熟叶片有不同用途,适合什么产品需要结合制法判断。
- 生长条件会留下差异品种、季节、光照与管理共同影响鲜叶,外形只是理解成茶的一部分线索。
从身边理解它
把泡开的叶底摊在浅色碟子上,分辨芽、叶和梗,再对照标签上的采摘与品种信息。你看到的是被采下、被加工的植物部位;这能帮助理解原料,却不能仅靠叶片大小确定树龄或品质。
一、分类与学名:从茶属到山茶属
茶树属于山茶科(Theaceae)山茶属(Camellia),学名 Camellia sinensis (L.) Kuntze。种加词 sinensis 意为”中国的”,直接点明了它的原产地身份;它曾长期被单独列为茶属(Thea sinensis),后经分类学修订并入山茶属,成为观赏山茶花的同属近亲[2]。
在山茶属的茶组(sect. Thea)内,茶树还有一批近缘种,如云南分布的大理茶(C. taliensis)、大厂茶(C. tachangensis)等。它们与茶树可杂交或形态相近,局部地区有采制利用,其分类归属(独立种还是并入茶树)学界仍有讨论,目前更多被视为茶树育种的野生近缘基因库,而非主流栽培对象[2][3]。
栽培上常说的”大叶种""小叶种”,对应的是 Camellia sinensis 下的两个主要变种:
- 中国小叶种 Camellia sinensis var. sinensis(简称 CSS)
- 阿萨姆大叶种 Camellia sinensis var. assamica(简称 CSA)
二者可自由杂交,自然界与人工选育中还存在大量过渡类型。因此,“变种”是遗传群体的统计倾向,不是非此即彼的”物种”边界[2][3]。许多现代品种本身就是杂交后代:例如龙井 43 来自小叶种群体,云抗 10 号来自大叶种与野生近缘种的杂交,而阿萨姆与中国的杂交后代则广泛种植于肯尼亚、印度等地。品种(cultivar)是人类在变种基础上通过选育获得的栽培单元,通常以无性繁殖保持遗传一致性。
二、起源与驯化
主流学术观点认为,茶树起源于中国西南——以云南为中心,包括四川、贵州部分地区。这里集中了最丰富的茶树种质资源:从原始森林中的野生大茶树,到树龄数百至上千年的栽培型古茶园,构成了一条从野生到驯化的完整链条[2][4]。云南普洱、临沧、西双版纳一带保存的栽培型古茶园,多为历代以种子繁殖延续的群体种,本身就是研究驯化过程的”活材料”[2]。
基因组学为这段历史提供了新证据。2018 年,中国团队完成了小叶种”舒茶早”的基因组测序:基因组约 3.1 Gb,预测蛋白编码基因约 3.4 万个[5]。该研究推算,两大变种——小叶种(CSS)与大叶种(CSA)——的分化发生在约 38 万至 154 万年前,远早于人类的栽培史。这说明两变种的差异主要是自然演化的产物,数千年的栽培选择只是在其上继续雕琢[5]。
同一研究还发现,茶树经历过两轮古老的全基因组复制(约 3000–4000 万年前与 9000 万–1 亿年前),由此扩增的基因家族中,恰好包含儿茶素、茶氨酸与咖啡碱合成的关键基因——茶之所以好喝,相当一部分”写”在这部基因组里[5]。
2020 年的一项群体研究进一步分析了 136 份中国茶树资源的转录组与代谢组,将其划分为五个主要类群,每个类群都有标志性的代谢物积累模式:大叶种(CSA)类群显著富集黄烷醇类(即儿茶素)、黄酮醇糖苷与酚酸等多酚物质,而小叶种类群在氨基酸等含氮化合物上具有优势——这为”大叶种多酚高、小叶种鲜爽”的经验提供了群体尺度的分子证据[6]。
三、形态特征
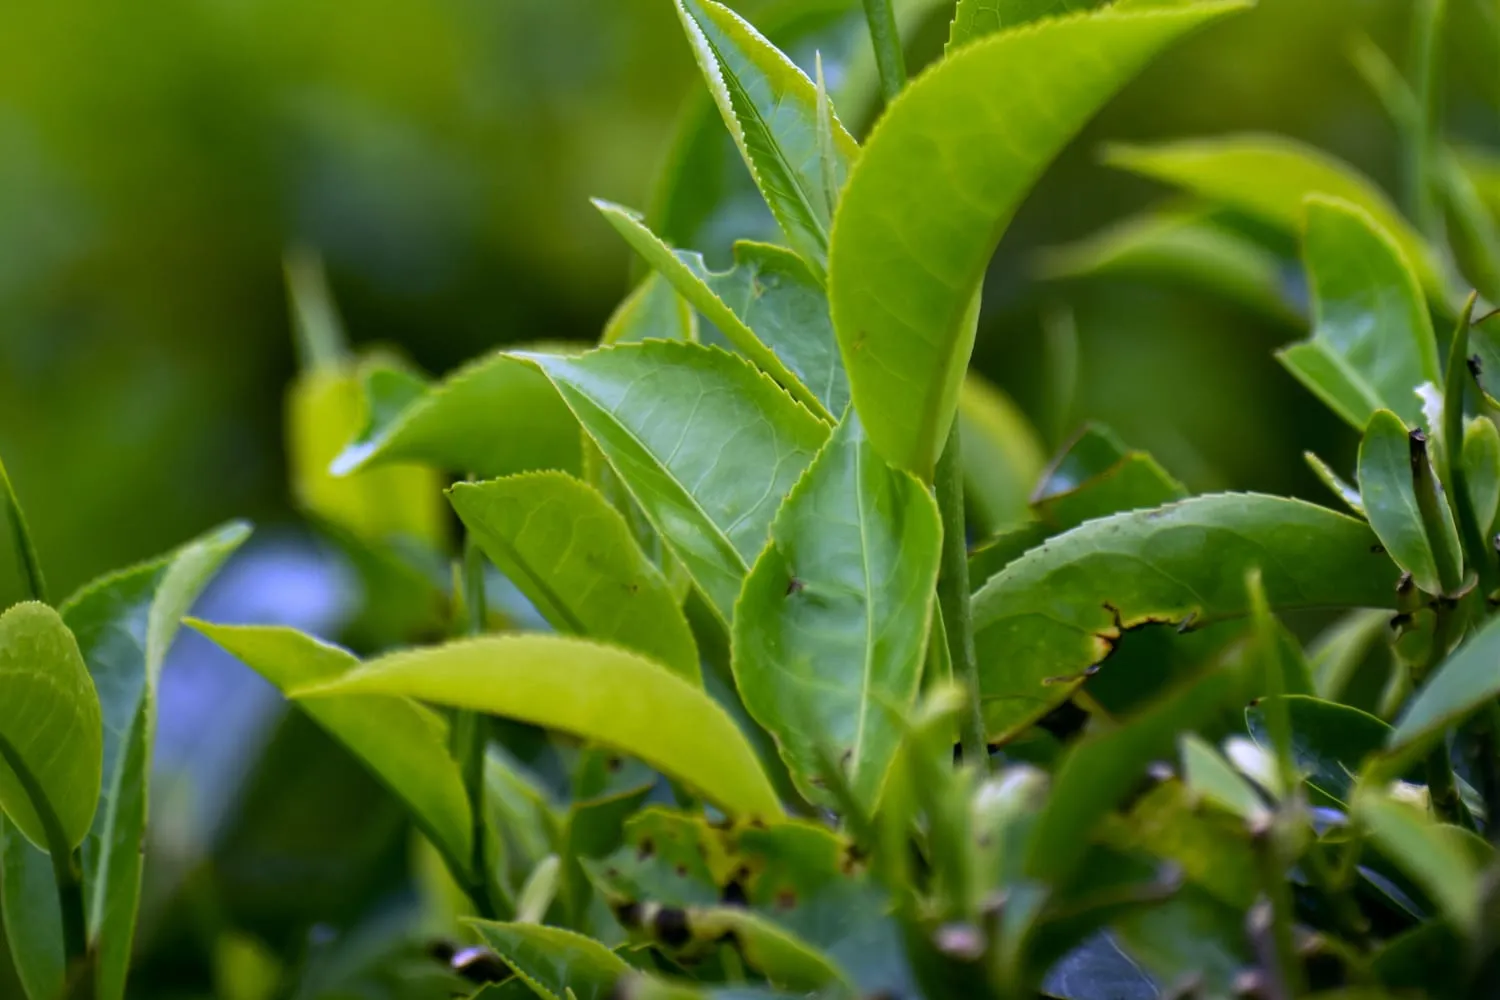
野生茶树可长成高达十余米的乔木(云南至今保留着树龄数百上千年的古茶树)[2];茶园里则被反复修剪成 1–2 米的茶蓬,既便于采摘,也促发新梢。
茶树的树型受遗传与修剪共同塑造。大叶种多为小乔木或乔木型,顶端优势明显,自然生长可高达数米;小叶种多为灌木型,分枝密集。栽培上通过定型修剪(幼龄期培养骨架)、轻修剪(维持采摘面)和深修剪/重修剪(更新衰老树冠)来调控树势与产量。修剪不仅改变树型,也影响光照分布与新梢萌发:适度修剪能增加树冠表面的有效芽数,但过度修剪会削弱树势、降低根系活力[3]。
- 叶:互生,革质而有光泽,叶缘有锯齿。一个识别要点是网状闭锁脉——侧脉伸向叶缘后并不到边,而是上弯与上一条脉相连[3]。叶片大小跨度极大,栽培学上按成熟叶面积粗分为:小叶 小于20 cm²、中叶 20–40 cm²、大叶 40–60 cm²、特大叶 大于60 cm²[3]——这正是两大变种差异的量化表达。
- 白毫:幼嫩芽叶背面密生银白色茸毛(trichomes),即”白毫”,与许多名茶的”毫香”和外形(如白毫银针)密切相关[3]。茸毛密度常与氨基酸含量正相关,也是幼嫩度的外在指标。
- 花与果:秋冬开白色花、黄色雄蕊,直径约 2–4 厘米,单生或成对,有香气;果为蒴果,内含 1–3 粒富油的种子[3]。茶树常花果同期。
- 芽叶色泽:芽叶多为嫩绿色,部分品种呈紫红色芽(俗称”紫芽”),与花青素的额外积累相关[1]。
四、叶片解剖与品质基础
茶叶的品质不仅取决于化学成分,也与叶片的解剖结构密切相关。幼嫩叶片表皮上覆盖着角质层与气孔,背面密生表皮毛(trichomes)。这些茸毛不仅是白毫银针等茶外形美的来源,其本身含有挥发性物质与氨基酸,对”毫香”有贡献[3]。
茶树叶片显微横切解剖:栅栏组织与海绵组织
对比小叶种(厚角质层+双层致密栅栏组织,耐寒高鲜)与大叶种(单层栅栏+发达多孔海绵组织,易破壁揉捻发酵)的显微解剖结构。
图解说明与适用条件
茶树大叶种与小叶种植物学对比示意 · 展示中国小叶种与阿萨姆大叶种在树型、叶片解剖结构(栅栏/海绵比)及酚氨比生化特性上的对照;具体性状在不同生态环境和品种系选育中存在连续过渡。
中国小叶种 (Camellia sinensis var. sinensis)
Camellia sinensis var. sinensis
6–9 对侧脉,叶缘锯齿细密锐利,叶尖钝尖
中国江南茶区 (西湖龙井、碧螺春)、福建 (铁观音、白毫银针)、日本 (煎茶/玉露)
阿萨姆大叶种 (Camellia sinensis var. assamica)
Camellia sinensis var. assamica
10–16 对侧脉,叶面泡状隆起 (Bullate),叶缘锯齿粗疏
中国云南 (普洱茶、滇红)、印度阿萨姆、肯尼亚、斯里兰卡高地
叶片内部由表皮、栅栏组织和海绵组织构成。栅栏组织细胞排列紧密、富含叶绿体,是光合作用与儿茶素、茶氨酸等物质合成的主要场所;海绵组织细胞间隙大,利于气体交换与物质运输。幼叶中叶肉细胞分化尚未完全,细胞质浓、液泡小,随着叶片成熟,液泡增大,多酚类物质在液泡中大量积累[1][3]。
从显微尺度看,茶树叶片上表皮角质层较厚,可减少水分蒸腾;下表皮气孔密度较大,是气体交换与水分散失的主要通道。幼嫩叶片的表皮毛(trichomes)不仅保护芽头免受紫外线与病虫害,其基部细胞还参与部分次生代谢,折断脱落后成为干茶表面”白毫”的主要来源。叶片厚度与栅栏组织层数会随光照强度变化:强光下叶片增厚、栅栏组织发达,儿茶素含量往往更高;弱光下叶片薄而柔嫩,氨基酸比例上升——这正是遮荫栽培能改善鲜爽度的结构基础[3][4]。
鲜叶细胞内最关键的品质”仓库”是液泡:儿茶素、咖啡碱、茶氨酸等水溶性物质主要储存在液泡中,而 PPO 等多酚氧化酶存在于细胞质中。细胞完整时,酶与底物被膜系统隔开,氧化不会发生;一旦细胞破损(如揉捻、做青),二者接触,氧化反应才被点燃——这正是绿茶要杀青、红茶要揉捻的解剖学基础[1]。
五、根系、养分与生长条件
茶树的根系发达,主根可深入土层 1 m 以上,侧根与须根则主要分布于 20–40 cm 的耕作层,负责吸收水分与矿质营养[3]。根深使茶树在干旱季节仍能维持水分供应;而根系的活力也直接影响新梢中茶氨酸等物质的合成,因为茶氨酸主要在根部合成后向新梢运输[1]。氮素形态对茶树品质影响显著:铵态氮(NH₄⁺)更有利于茶氨酸等含氮化合物的积累,硝态氮(NO₃⁻)则更易促进碳水化合物代谢[3]。
茶树对环境胁迫的响应也值得关注。干旱胁迫下,叶片气孔关闭、蒸腾下降,茶多酚与咖啡碱合成可能增强,而氨基酸积累受抑;低温胁迫下,细胞膜流动性下降,大叶种因细胞膜不饱和脂肪酸含量较低而更易受冻;强光与紫外线则诱导儿茶素、花青素等次生代谢物积累,作为抗氧化保护[3][4]。理解这些胁迫反应,有助于解释同一品种在不同海拔、季节、遮荫条件下风味差异的来源。
茶树是典型的亚热带喜湿作物。以下是栽培学上的典型适宜范围(随品种与微环境浮动)[3][4]:
- 温度:年均温约 15–25 °C,生长最适约 18–25 °C;低于约 10 °C 生长基本停滞。耐寒上限因变种而异:小叶种可耐短期约 -10 °C,大叶种在 0 °C 上下即易受冻害。
- 降水与湿度:年降水量约 1,000–2,000 mm,以 1,200–1,800 mm 且季节分配均匀为佳;生长期空气相对湿度以约 75–85% 为宜。怕旱,更怕积水。
- 土壤:排水良好的酸性土(pH 约 4.5–6.5,最适约 4.5–5.5),忌石灰性土壤与黏重涝地。
- 光照:喜漫射光、耐一定遮荫,这也是林下茶与高山茶园品质较好的原因之一[4]。
高海拔、云雾、昼夜温差大的环境,往往让茶树生长放缓、叶片积累更多内含物,风味更佳[4]。其机制在于:低温延缓生长,使氨基酸有更多时间积累;云雾削弱强光,降低儿茶素过度合成;昼夜温差大则减少夜间呼吸消耗,有利于香气物质与糖类积累[1][4]。
六、物候与采摘
茶树在温带与亚热带地区通常表现为多季萌发。春天气温回升后,越冬芽萌发形成春梢;采摘或修剪后,腋芽再次萌发形成夏梢、秋梢,部分热带茶园甚至还有冬梢。每一轮新梢的生化组成不同:春梢氨基酸高、酚氨比低,鲜爽度最佳;夏梢在高温强光下多酚与咖啡碱升高,苦涩味重;秋梢则介于两者之间[1][3]。
“明前""雨前”的讲究,本质上是物候学概念。清明前气温较低、生长慢,芽叶细嫩、氨基酸丰富;谷雨前后气温升高,芽叶生长加快,内含物浓度稍降但产量增加[3]。采摘标准则依茶类而异:龙井特级要求”一芽一叶初展”,白毫银针要求单芽,红茶与乌龙则可采一芽二三叶。
不同季节新梢的化学成分差异可用下表概括(典型趋势,随品种与环境浮动):
| 季节 | 氨基酸 / 茶氨酸 | 茶多酚 / 儿茶素 | 咖啡碱 | 风味指向 |
|---|---|---|---|---|
| 春茶 | 高 | 适中—偏低 | 高 | 鲜爽、甘甜、细腻 |
| 夏茶 | 相对低 | 高 | 高 | 浓涩、刺激、骨架大 |
| 秋茶 | 中 | 中 | 中 | 香气高、滋味平和 |
这也是为什么名优绿茶、白茶多强调春茶原料:春季的低温与适中光照最有利于氨基酸相对占优,而夏季高温强光则使多酚类大幅升高,更适合制成红茶、黑茶或作为大宗茶原料[1][3]。
七、遗传多样性与繁殖
茶树的染色体基数为 x=15,栽培品种多为二倍体,即 2n=30;自然界与栽培群体中也偶见天然三倍体等变异,这类个体因减数分裂紊乱而高度不育,只能靠无性繁殖保存[3]。
更关键的是,茶树具有自交不亲和性(self-incompatibility):同一植株的花粉难以使自身受精结实,天然状态下几乎全靠异交传粉[3]。这一生殖特性带来两个后果:
- 每一粒种子都是一次新的基因重组。种子繁殖的”群体种”内部个体差异极大——发芽迟早、叶形叶色、多酚与氨基酸比例各不相同,一园之中良莠不齐。
- 优良单株的性状无法通过种子稳定遗传。即使找到一株极好的母树,它的种子后代也会重新分离。
这正是现代茶树育种的逻辑起点:一旦发现优良单株,就以扦插等无性繁殖方式将其固定为基因型一致的”无性系品种”。福鼎大白茶、龙井 43、铁观音、肉桂等名优良种,本质上都是一个被克隆放大的个体[3]。
除了扦插,茶树还可以通过嫁接利用砧木的抗逆性或根系优势,例如将优良品种的接穗嫁接到耐寒或抗病砧木上,以扩大适栽范围;组织培养则在快速扩繁脱毒苗、保存珍稀种质方面发挥重要作用[3]。
现代茶树育种还在向更精准的方向发展:通过杂交组合优良亲本、利用分子标记辅助选择抗病/优质基因、结合基因组信息定向改良儿茶素、茶氨酸含量或抗寒/抗旱性[5][6]。这些工作正在把”看茶做茶”的经验,逐步转化为可设计、可预测的品种改良。
八、两大变种
上方的对比已经展示了核心差异。这里给出主要性状的典型范围(随品种、季节、环境与测定方法浮动,仅供理解)[1][3][4]:
茶树变种植物学工作台:中国小叶种 vs 阿萨姆大叶种
切换视角对比中国小叶种(灌木型·栅栏组织发达·酚氨比低·适制绿茶乌龙白茶)与阿萨姆大叶种(乔木型·海绵组织发达·茶多酚极高·适制红茶普洱)在树型结构、叶脉锯齿、组织横切解剖与生化酚氨比上的本质差异。
图解说明与适用条件
茶树大叶种与小叶种植物学对比示意 · 展示中国小叶种与阿萨姆大叶种在树型、叶片解剖结构(栅栏/海绵比)及酚氨比生化特性上的对照;具体性状在不同生态环境和品种系选育中存在连续过渡。
中国小叶种 (Camellia sinensis var. sinensis)
Camellia sinensis var. sinensis
6–9 对侧脉,叶缘锯齿细密锐利,叶尖钝尖
中国江南茶区 (西湖龙井、碧螺春)、福建 (铁观音、白毫银针)、日本 (煎茶/玉露)
阿萨姆大叶种 (Camellia sinensis var. assamica)
Camellia sinensis var. assamica
10–16 对侧脉,叶面泡状隆起 (Bullate),叶缘锯齿粗疏
中国云南 (普洱茶、滇红)、印度阿萨姆、肯尼亚、斯里兰卡高地
| 性状 | 小叶种 var. sinensis | 大叶种 var. assamica |
|---|---|---|
| 树型 | 灌木—小乔木 | 小乔木—乔木 |
| 叶型 | 叶长多 小于7 cm,叶面积约 10–25 cm² | 叶长常 大于10 cm,叶面积约 40–70 cm² |
| 叶质 | 革质、较脆硬 | 较薄、柔软 |
| 茶多酚(干重) | 约 18–25% | 约 25–33%,部分品种更高 |
| 儿茶素(干重) | 约 10–15% | 约 15–22%(约占多酚的 60–80%) |
| 咖啡碱(干重) | 约 2–4% | 约 2–4%,总体相近 |
| 耐寒性 | 较强,可耐短期约 -10 °C 低温 | 弱,0 °C 上下即易受冻害 |
| 适制茶类 | 绿茶、白茶、乌龙 | 红茶、普洱(晒青) |
需要强调的是:变种是”原料的底色”——它从遗传上决定了鲜叶的叶型、内含物(尤其多酚)与耐候性,再叠加风土与工艺,共同塑造出成茶。群体代谢组研究显示,大叶种类群的多酚类物质(尤其儿茶素)在群体水平上显著高于小叶种[6];而两者之间还有大量可自由杂交的过渡类型与人工杂交品系,实际生产中并非非此即彼[2]。
九、常见误区
- “大叶种和小叶种是两个物种”:不是。二者是同一物种 Camellia sinensis 下的两个变种,可自由杂交,自然界与栽培群体中存在大量过渡类型[2]。
- “古树茶就是野生茶”:树龄老不等于野生。云南的古茶园多为历代人工栽培、种子繁殖留下的群体种;真正的野生型茶树资源(含大理茶等近缘种)多数并未直接进入商品茶生产[2]。
- “海拔越高茶越好”:海拔只是通过温度、云雾与昼夜温差间接影响品质,且存在适宜区间;过高的海拔会导致生长缓慢、产量过低,并非越高越好[4]。
- “品种好就一定好喝”:品种只是原料底色,采摘标准、产地环境、加工工艺与储存条件共同决定杯中品质。
- “紫芽是变异不能喝”:紫芽多由花青素积累造成,只要无异味、工艺得当,同样可以制成茶叶,部分产区甚至以紫芽茶为特色。
相关条目
- 鲜叶里的风味化学——这片叶子里有什么、如何决定味道
- 茶树品种与名优良种图谱——代表性品种如何分类、选育与适制
- 全球产区地图——风土如何与品种共同塑造鲜叶
参考文献
- R-029 — 宛晓春 主编 (2003).《茶叶生物化学》(第3版). 中国农业出版社. ISBN: 978-7109066274.
- R-030 — 陈宗懋 主编 (2000).《中国茶叶大辞典》. 中国轻工业出版社. ISBN: 978-7501925094.
- R-042 — 庄晚芳 主编 (1988).《中国茶树栽培学》. 上海科学技术出版社. ISBN: 978-7532304899. —— 茶树生态适宜性区划与四大茶区栽培特征。
- R-134 — Willson, K. C., & Clifford, M. N. (1992). Tea: Cultivation to Consumption. Chapman & Hall. —— 茶树栽培至消费全链条的权威综述,印度与全球茶产业背景。
- R-251 — Wei, C.-L., et al. (2018). Draft genome sequence of Camellia sinensis var. sinensis provides insights into the evolution of the tea genome and tea quality. PNAS, 115(18), E4151–E4158. https://doi.org/10.1073/pnas.1719622115 —— 茶树(小叶种)基因组草图;全基因组复制扩增儿茶素、茶氨酸、咖啡碱相关基因;两大变种群体分化。
- R-057 — Yu, X., et al. (2020). Metabolite signatures of diverse Camellia sinensis tea populations. Nature Communications, 11, 5586. https://www.nature.com/articles/s41467-020-19441-1 —— 不同茶树品种代谢组差异,为适制性提供生化依据。
本篇知识图谱网络
从本文提到的茶、工序与风味,继续探索它们的关联。